基因序列拉响警报之后,还要把病毒送回实验室
2024年11月,加拿大公共卫生系统遇到了一条必须立即重视的消息。
2024年11月,加拿大公共卫生系统遇到了一条必须立即重视的消息。
不列颠哥伦比亚省一名青少年感染H5N1禽流感,病情严重,需要住院治疗。这是加拿大确认的首例本土获得的人类H5N1病例。调查没有找到明确感染来源,也没有发现这名患者把病毒传给其他人的证据。患者后来康复,但从下呼吸道样本里读出的病毒序列,留下了两个令人紧张的变化。
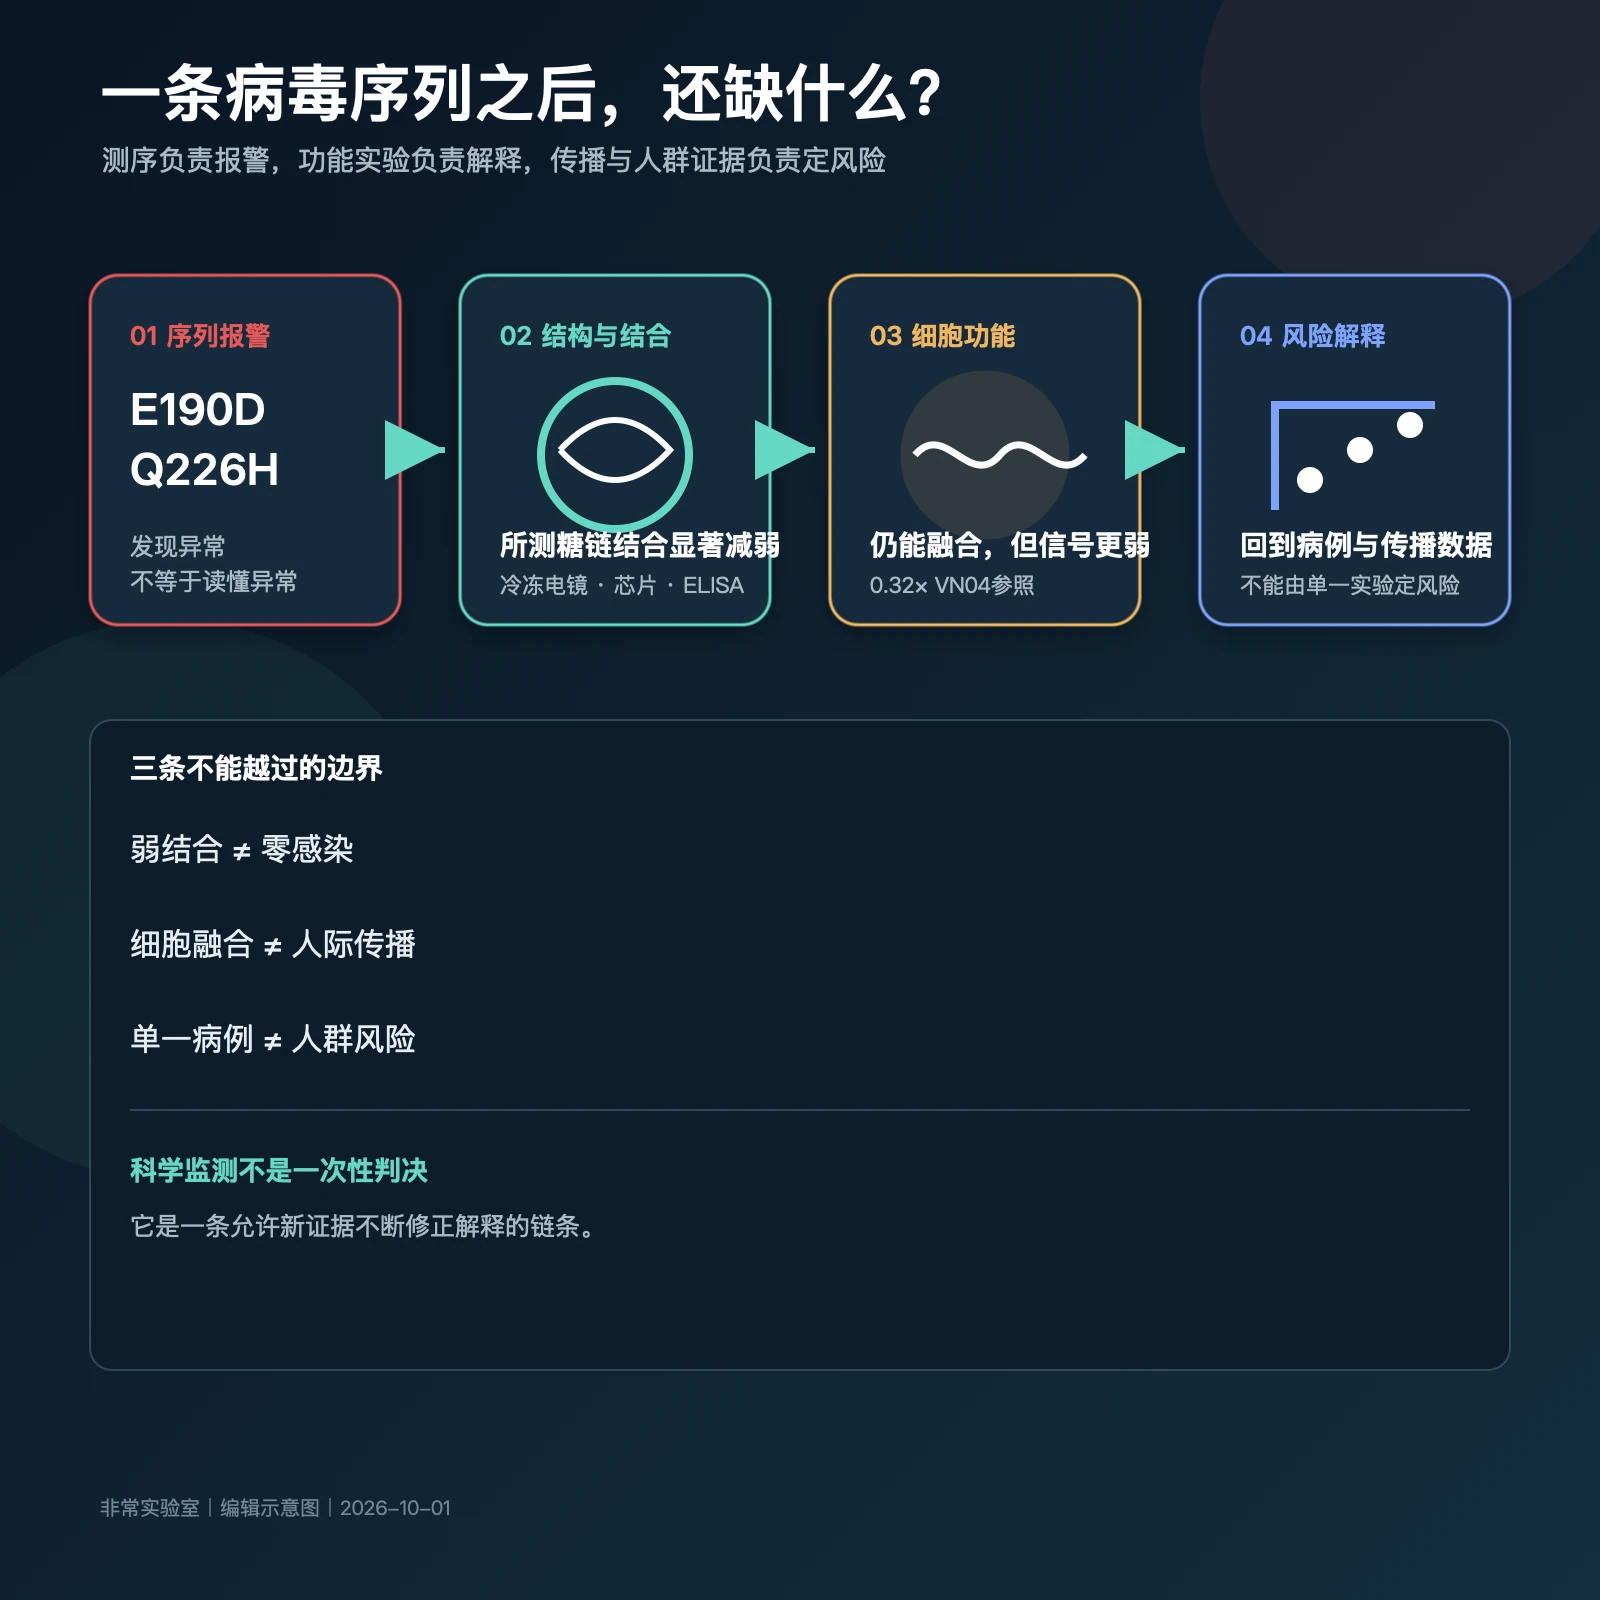
它们发生在流感病毒表面的血凝素上,编号为E190D和Q226H。
血凝素像是病毒进入细胞时使用的一套“抓握—开门”装置。它先识别细胞表面的唾液酸受体,帮助病毒附着;进入细胞后,又在酸性环境中改变形状,推动病毒膜与细胞膜融合。190位和226位都靠近受体结合区域。更敏感的是,其他流感病毒在类似位置的变化,曾和受体偏好改变、人类适应联系在一起。
测序系统于是做了它应该做的事:报警。
但一条基因序列只能告诉我们字母变了。它不能独自回答,这个变化究竟让病毒抓得更紧,抓向了不同的受体,还是反而松开了手。
2026年9月28日,不列颠哥伦比亚大学团队在《自然·通讯》发表了后续实验。他们把这两处突变带回冷冻电镜、糖链结合和细胞膜融合实验。结果并不是一个简单的“更危险”或“更安全”,而是一个更值得公共卫生系统记住的答案:两处看起来需要警惕的突变,都显著削弱了血凝素对所测受体的结合;但带突变的血凝素仍然保留了较弱的膜融合能力。
一条序列,为什么不能直接翻译成风险
流感研究常用唾液酸的连接方式来描述受体偏好。鸟源流感通常更偏好α2,3连接的唾液酸,人流感更常与α2,6连接受体相关。这种说法很方便,却也容易让人误以为人的呼吸道只有一种“人类受体”。真实情况更复杂:两类受体都可能出现,只是分布部位和丰度不同,儿童与成人的情况也不完全一样。
加拿大病例中的序列同样不是一株整齐划一的病毒。
论文记录,发病后第8天取得的下呼吸道样本里存在混合病毒群体。E190D和Q226H分别约占28%和35%的序列读数。这个比例不能直接相加,也不能证明两处变化总在同一个病毒基因组上。更关键的是,研究者没有从患者样本中分离出完整活病毒。
所以团队没有办法把“患者体内的病毒”原样拿回实验室。他们重建了带有这些变化的血凝素蛋白,逐步追问三个问题:结构有没有改变?它还能不能结合受体?它还能不能推动膜融合?
冷冻电镜先给出一个线索。
在两个对照H5血凝素中,研究者能看到一条自身糖链占据受体结合位点;在带有E190D和Q226H的BC24血凝素中,这条糖链的密度消失了。整体结构并没有坍塌,差异集中在结合位点附近。研究团队据此推测,这个血凝素对α2,3连接糖链的亲和力下降。
随后,糖链芯片把不同糖链摆在血凝素面前。在该方法的检测灵敏度内,BC24血凝素没有显示出对所测α2,3或α2,6唾液酸糖链的可检测结合。
为了确认是不是两处突变造成的,研究者又分别加入、撤回E190D和Q226H。结果显示,只要带有D190或H226中的任何一个,受体结合都会明显减弱;把两个位置恢复,α2,3结合也随之恢复。
从“突变靠近受体位点”到“突变具体改变了结合”,这一步不是序列数据库自动完成的,而是结构与生化实验一层层补上的。
抓得很弱,为什么还可能完成下一步
如果血凝素几乎检测不到与这些糖链结合,它为什么还能出现在一名真实患者体内?
研究团队把完整长度的血凝素表达在人肺泡癌细胞系A549中,再用低pH模拟病毒进入细胞后面对的酸性环境。三种血凝素都能引发细胞膜融合,但BC24血凝素的融合明显更弱:平均信号约为VN04参照血凝素的0.32倍。
这不是完整病毒感染实验。它没有模拟病毒在呼吸道中的全部过程,也不能告诉我们病毒在人与人之间如何传播。但它揭示了一个重要事实:受体结合和膜融合是同一套血凝素机器的两个环节,它们不会总以最直观的方式同步变化。
作者提出一种可能解释:单次结合虽然很弱,大量血凝素和大量受体之间的多价相互作用,仍可能共同提供足够的附着,让膜融合发生。可以把它想象成许多不太牢靠的小钩子。一个钩子抓不住,不代表上百个钩子同时接触时仍然毫无作用。
但这只是合理解释,不是已经在患者体内证明的机制。真实感染还涉及病毒复制酶、神经氨酸酶、免疫反应、感染部位和宿主状态。受体结合强弱本来就不是传播力的唯一刻度。
因此,这项研究最不应该被写成一句“原来这两处突变并不危险”。
它真正改变的是我们对两处血凝素突变功能的解释,而不是对所有H5N1风险的总判断。
预警要快,结论要慢
公共卫生监测有一个很难消除的时间差。
当一个严重病例出现,测序必须尽快完成。它要寻找已知耐药位点、哺乳动物适应相关变化和可能影响检测、疫苗或治疗的异常。系统不能等到每一处突变都做完动物实验、人群调查和独立复现,才决定是否提醒研究者和管理部门。
换句话说,警报本来就应该比确定性更早到达。
问题在于,警报一旦离开实验室,常常会被压缩成一句更容易传播的话:“发现了人类适应突变。”这句话可能来自既往研究中的关联,却很容易被听成对当前病毒功能的直接判决。
两年后的这项研究说明,序列解释必须允许被实验改写。一个位置在别的病毒背景中曾经与受体转换有关,不等于把它放进新的H5血凝素后,就会产生相同结果。蛋白质中的变化彼此影响,宿主环境也会改变它们的意义。
成熟的监测体系,不是减少警报,而是给警报建立后续路径:
第一步,测序发现异常;第二步,结构与结合实验判断它可能改变了什么;第三步,细胞和动物模型检验病毒生命周期中的功能;第四步,病例与传播调查确认这些变化是否真的在人群中产生后果。
任何一步都不能独占结论。
这也意味着,公众不必在“恐慌”和“没事”之间二选一。科学可以同时说两句话:这处变化值得尽快研究;现有证据还不足以说明它增加了人际传播能力。
真正可靠的系统,会留下改正自己的位置
2024年的测序警报并没有错。它让研究者知道哪些位置需要优先追踪,也把一个罕见重症病例变成了可继续研究的问题。
2026年的功能实验也没有“推翻”监测。它是在完成监测没有能力独自完成的后半段:把字母变化变成可以被观察、测量和质疑的生物学过程。
截至病例调查时,没有发现由这名患者引起的人际传播。这个事实很重要,却不能被外推成H5N1不会人际传播;BC24血凝素在所测受体上结合很弱,也很重要,却不能被外推成病毒已经失去感染能力。单一病例、重建蛋白和细胞融合实验,更不能替代持续的动物疫情、人类暴露和传播链监测。
这项研究留下的最好启示,不是一个可以放心的结论,而是一种面对不确定性的工作方式。
先让警报响起来。然后把病毒送回实验室,把每一个看似熟悉的突变重新做一遍实验。最后,再把实验结果送回真实世界,和病例、接触者、动物宿主与人群数据放在一起。
可靠的科学,不是第一次就把所有事情说对。
而是从一开始,就为后来纠正自己的解释留下位置。
证据边界
- 核心功能结果来自单一研究团队对一名患者来源序列的结构、生化与细胞实验,尚无独立复现。
- 完整病毒未从患者样本中分离;A549膜融合实验不等于完整感染或传播实验。
- PHAC与BCCDC支持病例、序列和传播调查背景,不验证论文的功能结果。
- 本文不据此上调或下调H5N1总体风险;公共卫生判断应以相关机构最新通报为准。
来源
- Nature Communications:https://doi.org/10.1038/s41467-026-77829-x
- UBC:https://news.ubc.ca/2026/09/canada-first-human-bird-flu-case-pandemic-threats/
- PHAC:https://www.canada.ca/en/public-health/news/2024/11/update-on-avian-influenza-and-risk-to-canadians.html
- PHAC监测公报:https://www.canada.ca/en/public-health/services/surveillance/human-emerging-respiratory-pathogens-bulletin/2024/november.html
- BCCDC:https://www.bccdc.ca/health-info/diseases-conditions/avian-influenza
编辑状态:可送审,未获用户终审,不代表已发布。